- 移动端


武汉伊莱瑞特生物科技股份有限公司品牌商
12 年
手机商铺
- NaN
- 0.7999999999999998
- 0.7999999999999998
- 2.8
- 2.8
推荐产品
公司新闻/正文
一束蓝光,如何拿下2026诺贝尔奖?
19 人阅读发布时间:2026-10-15 10:05
2026年10月5日,瑞典卡罗琳医学院宣布,将诺贝尔生理学或医学奖授予美国科学家Karl Deisseroth、德国科学家Peter Hegemann和Georg Nagel,表彰他们在光门控离子通道和光遗传学方面的发现。
这项技术的起点,是一株没有眼睛的单细胞绿藻。Hegemann和Nagel在藻类中发现了一种名为通道视紫红质(Channelrhodopsin)的蛋白质,当蓝光照射时,它就像一扇光控的门,让带电离子涌入细胞并产生电信号。2005年,Deisseroth团队将编码ChR2的基因导入体外培养的大鼠神经元,用蓝光成功触发了神经信号。这一步是在细胞水平、体外实验中完成的,证明ChR2可以在哺乳动物神经元中功能性表达[1]。两年后,研究人员进一步通过转基因小鼠,让ChR2在活体小鼠大脑中稳定表达,并实现了光控神经活动。
光遗传学由此诞生。它让研究人员能够在活体大脑中精确操控特定神经细胞,研究记忆、感觉和行为背后的神经回路。诺贝尔奖评委、瑞典卡罗琳医学院临床免疫学教授潘嫱表示,这项技术已展现出临床潜力——研究人员正尝试利用它帮助视网膜疾病患者恢复部分视觉功能,并研究抑郁症、阿尔茨海默病和疼痛等疾病背后的神经机制。
如今,光遗传学早已不再局限于单一神经元。研究人员开始将各类光敏蛋白导入干细胞、免疫细胞、胶质细胞、类器官以及组织消化后的混合细胞群体,在更复杂的体系中实现光控。从“光控刺激”到“可发表的数据”,中间是一条完整的工具链:表达验证、目标细胞富集与背景去除、光刺激后功能检测、细胞活力与代谢分析。
一、光敏蛋白表达验证
当实验对象从单一原代神经元扩展到免疫细胞、干细胞、胶质细胞或组织消化后的混合细胞群体时,仅凭荧光标签已不足以判断光敏蛋白的表达情况。需要进一步确认:
-
光敏蛋白是否表达在目标细胞上;
-
目标细胞的表达效率如何;
-
是否在非目标细胞中发生非特异性表达。
在以ChR2为代表的光遗传学模型中,Schiller等人通过流式细胞术设计了系统的门控策略,以CD45作为免疫细胞的表型标志,验证了ChR2荧光标记是否在CD45+免疫细胞中非特异性表达,从而确认ChR2的表达特异性[2]。这种验证如果缺少可靠的表型标志物抗体,仅靠荧光标签很难得出确定性结论。
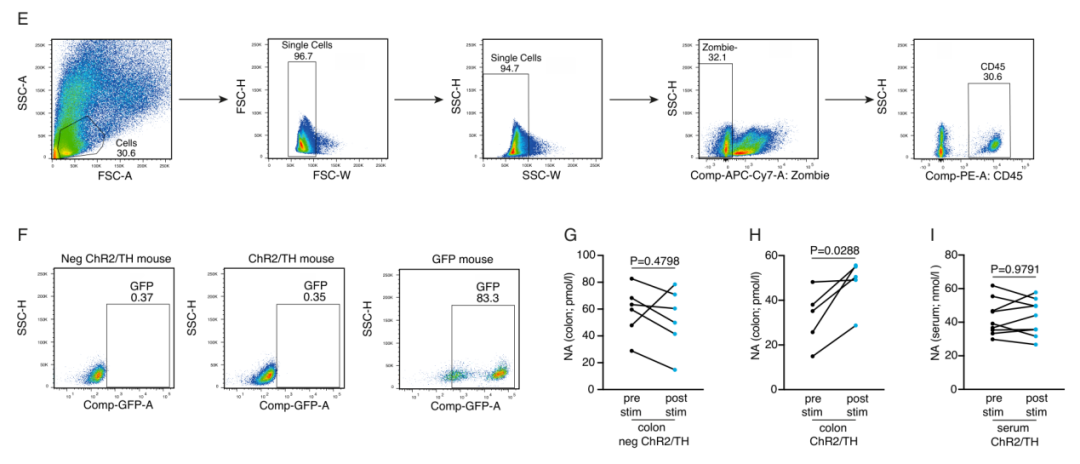
图1. 光敏细胞流式抗体表达特异性验证[2]
Elabscience®流式抗体产品线覆盖CD45、CD3、CD4、CD8等关键细胞亚群标志物,可帮助您在光遗传学实验中完成两类核心验证:
-
鉴定光敏蛋白阳性细胞属于神经元、胶质细胞还是免疫细胞,确认表达特异性;光敏蛋白是否表达在目标细胞上;
-
在光刺激后分析特定细胞亚群的活化状态、表面标志物变化或胞内细胞因子表达。
多色Panel可在一管样本中同时获取光敏蛋白表达信号与细胞表型的完整信息。
二、背景细胞去除与目标细胞富集
当光遗传学实验从体外培养的原代神经元扩展到组织消化后的混合细胞群体、干细胞分化体系或免疫细胞研究时,一个现实问题会出现:如何在不损伤目标细胞的前提下,把不需要的细胞去除掉?
Sauer等人通过CD8磁珠阴选从小鼠脑浸润白细胞中分离CD8+T细胞,分选后的细胞保持未被标记的天然状态,用于下游细胞因子分泌检测和神经元轴突杀伤实验,明确了CD8+T细胞在神经炎症中的直接效应[3]。Drago等人则通过CD4磁珠阴选从小鼠淋巴结单细胞悬液中纯化CD4+T细胞,纯度达95%,分选后的细胞成功用于与神经干细胞共培养,评估其对神经干细胞免疫调节功能的影响[4]。
这两个案例的共同逻辑是:目标细胞全程不被抗体结合、不被磁珠标记,分选后保持更接近天然的细胞状态——这对后续需要光刺激和功能检测的光遗传学实验尤为重要。
Elabscience®除了有常见T细胞(如CD4+T细胞、CD8+T细胞等)和B细胞的阴性分选产品外,在Naive T、Memory T、Pan Granulocyte、NK细胞等细分亚型上也有细胞分选产品布局。
三、光刺激后功能检测
这是光遗传学实验“出数据”的核心环节,也是检测工具需求最密集的环节。
在分泌层面,光遗传学正在从神经科学向免疫治疗拓展。Zhao等人通过ELISA定量了光诱导后IFN-γ和IL-6的分泌水平,验证了光控工程化细胞的免疫调节功能[5];Yi等人利用ELISA检测了光刺激后小胶质细胞IL-1β的释放动态,在1、6、24小时均观察到显著增加[6]。
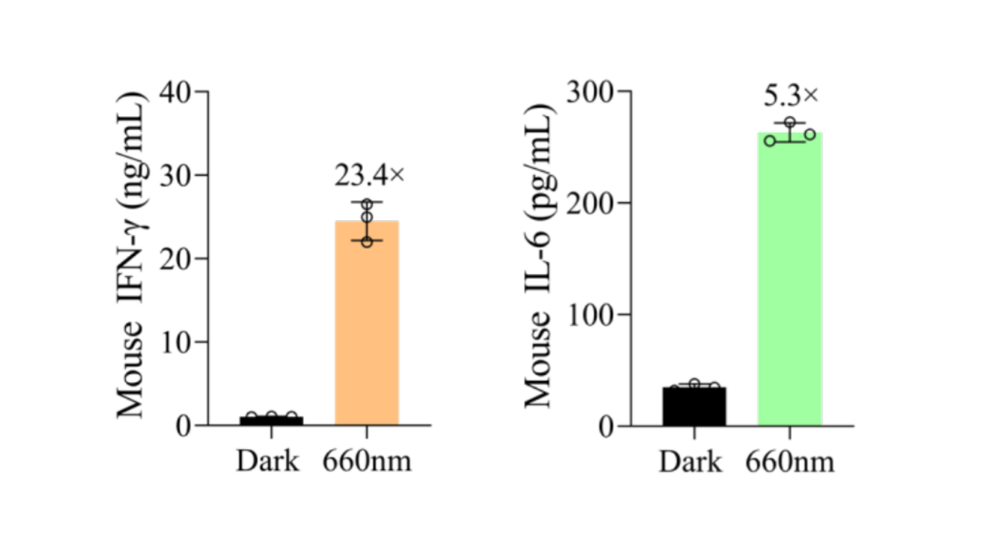
图2. HEK 293T细胞中光控释放细胞因子的ELISA定量结果,48 h光照后检测(该文献使用Elabscience®产品,IFN-γ: E-EL-M0048, IL-6: E-EL-M0044)
在活力与代谢层面,光遗传学实验必须排除光毒性对结论的干扰,同时追踪神经活动的能量代价。Fereidounian等人通过MTT和流式Annexin V/PI双染评估了蓝光刺激对人骨髓和脂肪来源间充质干细胞活力和凋亡的影响,确认ChR2表达联合光刺激组与对照组无显著差异,排除了光毒性对实验结论的干扰[7]。Richner等人在Thy1-ChR2小鼠中观察到光刺激后皮质NADH荧光信号快速短暂下降,提示葡萄糖代谢与光遗传学刺激之间存在紧密的时间耦合关系[8]。
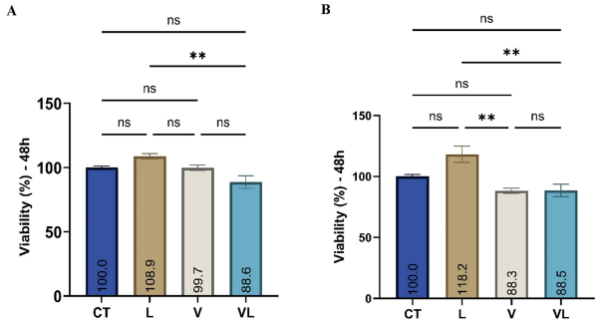
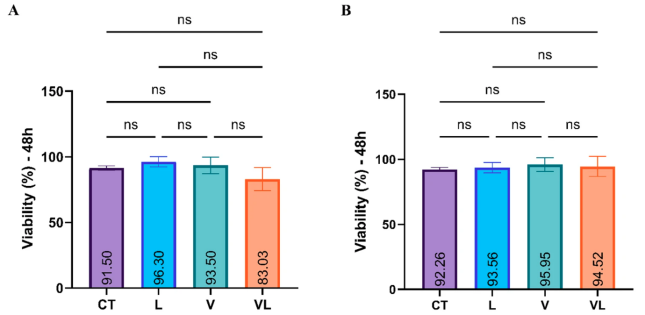
图3. MTT(左A & B)和Annexin V/PI(右A & B)双染评估蓝光刺激对间充质干细胞活力和凋亡的影响
从光敏蛋白表达验证、目标细胞富集与背景细胞去除,到光刺激后的分泌、活力、凋亡和代谢检测,光遗传学研究的每一步都需要对应的工具支持。
四、Elabscience®助力诺奖相关研究
Elabscience®可提供覆盖上述流程的产品线:流式抗体用于光敏蛋白表达特异性和细胞亚群分析;磁珠分选试剂盒用于目标细胞富集和背景细胞去除;ELISA试剂盒用于IFN-γ、IL-6、IL-1β等细胞因子定量;细胞功能与凋亡检测产品用于MTT、Annexin V/PI等活力和凋亡评估;细胞代谢检测产品覆盖葡萄糖摄取、乳酸生成、ATP水平及NAD+/NADH比值等关键指标。它们共同组成从“光控刺激”到“可发表数据”的完整工具链。
部分产品展示如下
| 货号 | 产品名称 |
| E-AB-F1136D | PE Anti-Mouse CD45 Antibody[30-F11] |
| E-AB-F1013C | FITC Anti-Mouse CD3 Antibody[17A2] |
| E-AB-F1097J | PerCP/Cyanine5.5 Anti-Mouse CD4 Antibody[GK1.5] |
| E-AB-F1104E | APC Anti-Mouse CD8a Antibody[53-6.7] |
| MIM002N | EasySort™ Mouse CD4+T Cell Isolation Kit |
| MIM003N | EasySort™ Mouse CD8+T Cell Isolation Kit |
| CQM001 | CellaQuant™ Mouse IL-6 (Interleukin 6) ELISA Kit |
| CQM005 | CellaQuant™ Mouse IFN-γ (Interferon Gamma) ELISA Kit |
| E-CK-A211 | Annexin V-FITC/PI Apoptosis Kit |
| E-BC-K804-M | NAD⁺/NADH Colorimetric Assay Kit |
| E-BC-F041 | Glucose Uptake Fluorometric Assay Kit |
从诺贝尔奖的里程碑发现到持续的研究创新,对光遗传学的深入探索离不开精准可靠的检测工具。
随着对光敏蛋白与光控细胞生物学理解的加深,Elabscience®将继续致力于提供完整的实验解决方案,助力科研人员在神经调控、免疫治疗等领域取得新的突破。
参考文献
[1] Boyden, E., Zhang, F., Bamberg, E, et al. Millisecond-timescale, genetically targeted optical control of neural activity. Nature Neuroscience, 2005.
[2] Schiller M, Azulay-Debby H, Boshnak N, et al. Optogenetic activation of local colonic sympathetic innervations attenuates colitis by limiting immune cell extravasation. Immunity, 2021.
[3] Brian M. Sauer, William F. Schmalstieg, Charles L. Howe, et al. Axons are injured by antigen-specific CD8+ T cells through a MHC class I- and granzyme B-dependent mechanism. Neurobiology of Disease, 2013.
[4] Drago, D., Basso, V., Gaude, E. et al. Metabolic determinants of the immune modulatory function of neural stem cells. Journal of Neuroinflammation, 2016.
[5] Yue Zhao, Rui Li, Yirui Han, et al. On-demand cancer immunotherapy via single-cell encapsulation of synthetic circuit–engineered cells. Science Advances, 2026.
[6] Min-Hee Yi, Yong U. Liu, Anthony D. Umpierre, et al. Optogenetic activation of spinal microglia triggers chronic pain in mice. PLOS Biology, 2021.
[7] Fereidounian, M.A., Bourbour, S., Shirkavand, A. et al. Effects of optogenetic stimulation on neural gene expression in human bone marrow and adipose-derived mesenchymal stem cells. BMC Biotechnol, 2026.
[8] Thomas J Richner, Ryan Baumgartner, Sarah K Brodnick, et al. Patterned Optogenetic Modulation of Neurovascular and Metabolic Signals. Journal of Cerebral Blood Flow & Metabolism, 2014.